Indexación hipocámpica: recordar es descomprimir
[!NOTE] TL;DR: La teoría de la indexación hipocámpica describe un hipocampo que no almacena recuerdos, sino índices comprimidos que la corteza descomprime de forma generativa. Reúno aquí la literatura 2025-2026, mis datos de fMRI sobre el precúneo y su traducción a RAG: HippoRAG ya valida el andamio (hasta 20 puntos más en QA multi-hop, 10 a 30 veces más barato que la recuperación iterativa), y la alucinación se lee como un pattern completion falso.
Una duda nacida dentro del escáner
El hipocampo no guarda tus recuerdos. Guarda sus direcciones. Esa es la provocación de la teoría de la indexación hipocámpica (Teyler y DiScenna, 1986), y la volví a habitar en 2024, frente a unos datos de fMRI que creía haber entendido del todo.
Los participantes habían explorado una ciudad virtual durante 45 minutos. Al día siguiente, en el escáner, juzgaban si reconocían cada objeto y si podían recuperar el lugar y el momento de su codificación. Lo que me detuvo no fue la activación del lóbulo temporal medial, que era la que esperaba. Fue la conectividad efectiva: la influencia del precúneo sobre el córtex temporal medial mediaba la calidad subjetiva del recuerdo (Foudil y Macaluso, 2024). Confieso que buscaba una historia puramente hipocámpica, y el precúneo se coló en la fiesta con la naturalidad de quien lleva años invitado.
Mi pregunta, reducida a una sola: ¿el índice hipocámpico es una tabla de búsqueda que devuelve registros, o un andamio escaso que la corteza usa para regenerar la experiencia?
El andamio que no almacena nada
La versión moderna de la teoría (Teyler y Rudy, 2007) postula que el hipocampo graba una traza escasa que liga los módulos neocorticales activos durante un episodio: qué, dónde, cuándo. El hipocampo no copia el contenido. Anota las asociaciones entre piezas distribuidas y, ante una señal parcial, reactiva el conjunto. A eso lo llamamos pattern completion, y el nombre engaña: no es un reconocimiento de patrones, es una reconstrucción generativa a partir de pistas mínimas.
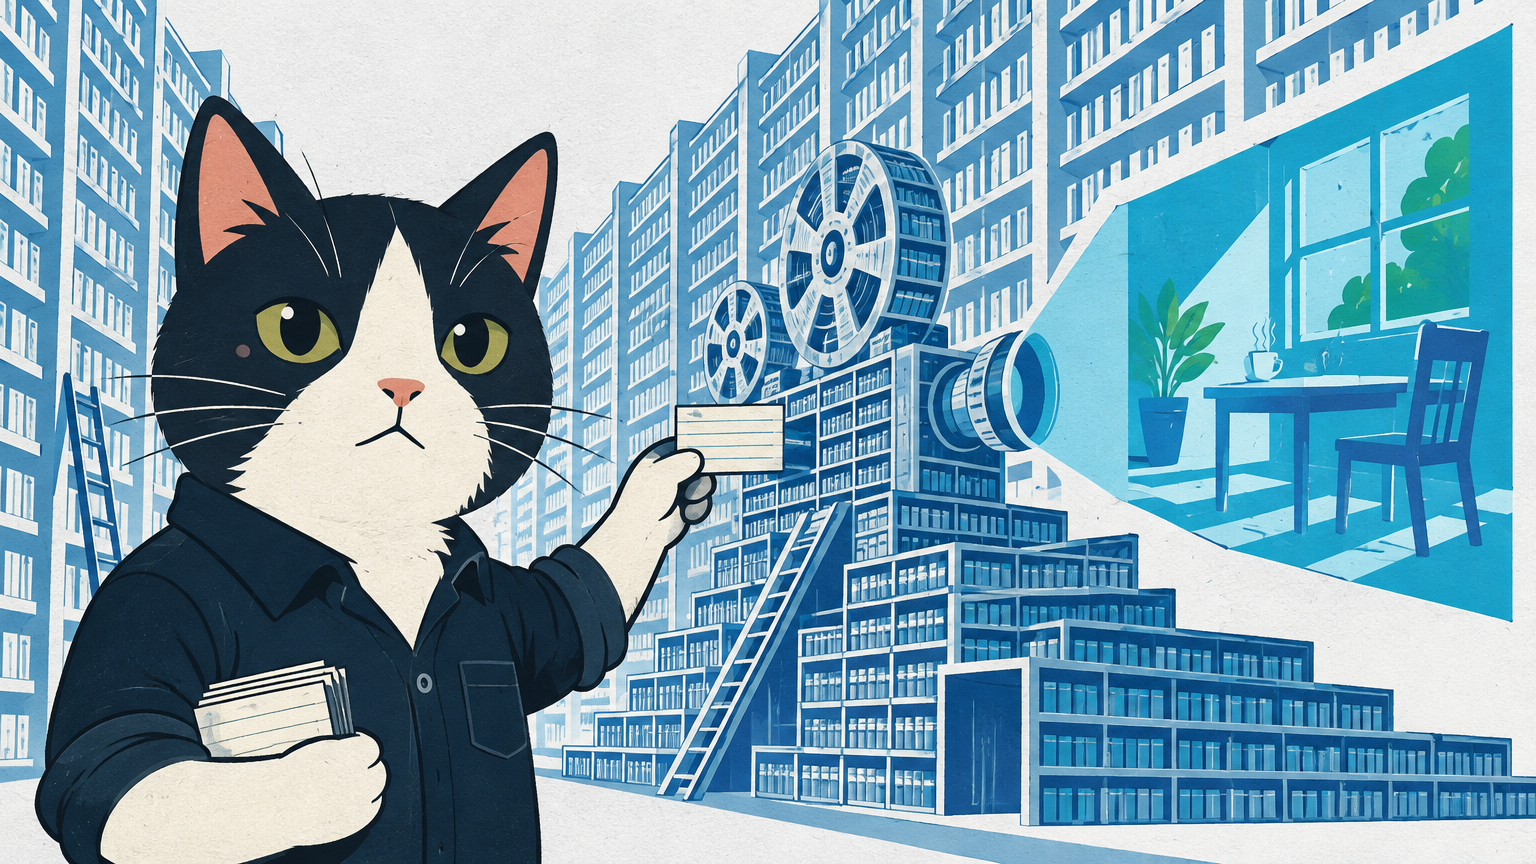
La imagen que uso con mis alumnos: el mozo de archivo que jamás lee los documentos. Solo apunta dónde está cada uno. Cuando le pides un expediente completo, reúne las carpetas y te las entrega. Los documentos viven en las estanterías, que son la corteza. El mozo no lee, y sin embargo sin él el archivo es un cementerio de papeles sin acceso.
La evidencia de neuronas únicas en humanos ha reavivado el debate. Kolibius, Josselyn y Hanslmayr (Trends in Cognitive Sciences, mayo de 2025) reconcilian dos corpus que parecían incompatibles: las neuronas índice, que codifican la conjunción de todos los elementos de un episodio, y las neuronas concepto, que responden a un elemento específico, como tu amigo o tu café habitual. Su propuesta es gradual y elegante: a través de episodios solapados que comparten elementos, una parte de las neuronas índice derivan en neuronas concepto. El índice no es un registro fijo. Es un andamio que envejece hacia lo semántico.
flowchart LR
  A["Experiencia multimodal (neocórtex)"] -->|"compresión según esquema"| B["Índice hipocámpico: qué / dónde / cuándo"]
  B -->|"señal parcial (cue)"| C["Pattern completion (hipocampo)"]
  C -->|"reactivación dirigida"| D["Reinstatement neocortical (precúneo + córtex temporal medial)"]
  D --> E["Recuerdo subjetivo (recollection)"]
  B -.->|"replay: entrenamiento del generador"| A
  D -.->|"retroalimentación sobre el índice"| B
Granularidades que coexisten
Uno imagina espontáneamente que un recuerdo pasa de detallado a esquemático con el tiempo, como una foto que se destiñe. La síntesis de Tarder-Stoll, Sekeres, Levine y Moscovitch (Physiological Reviews, abril de 2026) dice otra cosa: las representaciones de granularidad fina (detalles contextuales) y gruesa (gist) se codifican a la vez en la traza, y es su ponderación relativa en la recuperación lo que decide si el recuerdo se reproduce o se reconstruye. La actividad hipocámpica sostiene la reproducción detallada; los esquemas del córtex prefrontal medial facilitan la reconstrucción y la generalización.
Ranganath y Ritchey (Annual Review of Psychology, publicado en línea el 21 de octubre de 2026) formalizan el mismo giro con dos modos neurocognitivos: un modo generativo, que infiere y predice apoyándose en el conocimiento previo, y un modo contextual, que ancla el recuerdo a puntos específicos de contexto. El recuerdo no es la lectura de un almacén estático. Es el producto dinámico de la interacción córtico-hipocámpica entre ambos modos.
Piensa en dos copias del mismo negativo: una copia en tamaño carnet y un póster. La traza contiene las dos, y la recuperación elige cuál revelar según la tarea, la edad del recuerdo y tus objetivos. Que la foto vieja del póster sea borrosa no es un fallo de conservación. Es una ponderación distinta.
Sin transferencia unidireccional
Aunque la consolidación de sistemas descansa sobre evidencia clínica bien establecida, la amnesia retrógrada graduada temporalmente entre ellas, su versión popular merece una corrección. El traspaso unidireccional del hipocampo a la corteza, con jubilación progresiva del primero, ya no aguanta los datos.
Horner (Trends in Cognitive Sciences, noviembre de 2025) propone un espacio de estados tridimensional para cada recuerdo: la fuerza del mecanismo hipocámpico, la del mecanismo no hipocámpico y la especificidad episódica de la recuperación. Las tres dimensiones son mecánicamente independientes y aditivas. Un recuerdo puede ocupar cualquier punto del espacio y moverse a cualquier otro, incluso "hacia atrás", hacia una mayor dependencia hipocámpica tras la consolidación.
Los datos de Joensen et al. (Journal of Neuroscience, 2024) sostienen esa lectura en un retraso de apenas 24 horas: la reinstatement neocortical holística sigue correlacionada con el pattern completion hipocámpico, y ambas contribuciones se suman en lugar de compensarse. El índice no entrega el expediente y se va de vacaciones. Sigue firmando cada consulta, incluso en los recuerdos viejos.
Mi evidencia en primera persona
Mi tesis y mis tres artículos posteriores viven en el terreno que más me interesa: la memoria estudiada en contextos naturalistas, no en cajas de laboratorio. Tres observaciones alimentan mi lectura de la teoría del índice.
Primera. En un estudio de fMRI con estímulos cinematográficos (J. Neurosci., 2020), la activación del precúneo durante la recuperación del orden temporal se modulaba según la condición narrativa: mismo par de eventos, distinta línea argumental, distinta respuesta parietal. Los análisis multivoxel añadieron una sorpresa: el precúneo también contenía una representación lineal de las distancias temporales, independiente del contexto. Concluí que la recuperación del orden naturalista apela a dos mecanismos conjuntos, cronológico y reconstructivo, ambos en la corteza parietal medial.
Segunda. Con codificación ecológica por teléfonos móviles, hasta 3 semanas de duración, frente a una ciudad virtual de 45 minutos y un paradigma clásico de 15 minutos (Sci. Rep., 2021), el orden temporal mostró propiedades invariantes a la escala, con contribuciones no cronológicas significativas. Los datos respaldan una traza episódica multidimensional, no una cinta con marcas de tiempo.
Tercera, y es mi resultado preferido. En el estudio de 2024, la influencia del precúneo sobre el córtex temporal medial mediaba la experiencia subjetiva de recordar, ese estatus de "revivir" que distingue la recollection de la mera familiaridad. La reconstructive memory no está confinada al lóbulo temporal medial. Recluta al precúneo como pieza de pleno derecho del bucle, y la cualidad subjetiva emerge de la interacción entre ambos, no de una lectura de archivo. Si quieres la versión en inglés de este argumento, la desarrollé en Hippocampal Memory Indexing Theory: A Scaffold, Not a Store.
Recordar es descomprimir
Aquí converge lo que más me ha impresionado de la literatura reciente. Spens y Burgess (Nature Communications, 25 de junio de 2026) presentan un modelo computacional explícito: las experiencias secuenciales se codifican en el hipocampo en forma comprimida, y el replay de esas huellas entrena una red generativa neocortical. La corteza aprende semántica reconstruyendo episodios, y el recuerdo se convierte en descompresión: la traza hipocámpica aporta el esquema más los detalles impredecibles, y el generador neocortical rellena el resto con sus predicciones. Los autores nombran el mecanismo sin rodeos: retrieval-augmented generation, con compresión y consolidación añadidas. Las distorsiones por esquema dejan de ser un bug. Son el precio de un formato comprimido.
La dirección inversa también está documentada. En el modelo de Kolibius et al., las neuronas concepto emergen de las neuronas índice a través de experiencias solapadas: lo semántico se construye sobre lo episódico, y luego lo semántico estructura la codificación episódica nueva. Y Theves (Trends in Cognitive Sciences, en línea el 24 de septiembre de 2026) empuja el índice hasta la imaginación: la indexación hipocámpico-cortical puede sesgar la activación cortical hacia configuraciones nunca vividas, generando estados nuevos a partir de la re ponderación de estados indexados. Imaginar, en este marco, es el mismo mecanismo que recordar, apuntado a una coordenada vacía del mapa.
La traducción artificial
Si el recuerdo es descompresión generativa, tu RAG ya es medio hipocampo, aunque nadie se lo haya dicho. La correspondencia es directa: memoria explícita (embeddings, grafos) frente a memoria paramétrica (pesos) reproduce el par índice hipocámpico frente a generador neocortical, y el replay anticipa el fine-tuning.
El ejemplo que lo vuelve medible es HippoRAG (NeurIPS 2024). Un LLM transforma el corpus en un grafo de conocimiento sin esquema, el índice hipocámpico artificial; ante una consulta, las entidades semilla alimentan un Personalized PageRank que propaga la activación por el grafo. Eso es pattern completion en un solo paso, no recuperación iterativa. Los números del artículo: ganancias de unos 3 y 20 puntos sobre RAG denso en MuSiQue y 2WikiMultiHopQA, brecha que crece a 6 y 38 puntos cuando se exige recuperar todos los pasajes de apoyo, y un coste en línea de 10 a 30 veces menor, con una velocidad de 6 a 13 veces mayor que la recuperación iterativa tipo IRCoT.
{
  "type": "bar",
  "data": {
    "labels": ["MuSiQue", "2WikiMultiHopQA"],
    "datasets": [
      { "label": "Ganancia en recuperación (puntos)", "data": [3, 20], "backgroundColor": ["#3b82f6", "#3b82f6"] },
      { "label": "Todos los pasajes de apoyo, top-5 (puntos)", "data": [6, 38], "backgroundColor": ["#f59e0b", "#f59e0b"] }
    ]
  },
  "options": {
    "responsive": true,
    "plugins": { "title": { "display": true, "text": "HippoRAG frente a RAG denso (ColBERTv2), benchmarks multi-hop (NeurIPS 2024)" } },
    "scales": { "y": { "title": { "display": true, "text": "Puntos de mejora" } } }
  }
}
[!WARNING] El marco también explica el fallo, y este es el punto que más me importa: si el recuerdo es pattern completion generativo, la alucinación no es un ruido exótico. Es un completion sobre un índice pobre, una descompresión que rellena con predicciones lo que la traza comprimida no guardó. Tratarla como problema del modelo es mirar el proyector cuando la película está cortada.
Conviene leer los límites en el propio artículo: en HotpotQA, con menores exigencias de integración de conocimiento, las ganancias se reducen, y los autores hablan de un compromiso entre concepto y contexto. Y el índice artificial es content-addressable, direcciones consultables por similitud, mientras que el índice biológico hace algo que ningún vector store hace solo: reabstraer sus propias direcciones con cada episodio solapado. Sobre esa línea escribí más en Mémoire reconstructive : l'architecture de l'intelligence.
Lo que sigue sin resolverse
Sé honesto sobre los agujeros, empezando por los míos. Mis tres estudios son fMRI con muestras modestas, correlacionales en su núcleo, y la conectividad efectiva es un modelo de la influencia entre regiones, no una medición directa de ella. La metáfora de compresión está formalizada computacionalmente en Spens y Burgess, pero nadie ha medido neurona a neurona el "tamaño" de la traza comprimida en un cerebro vivo. Y la traducción a IA descansa en benchmarks de QA, no en tráfico de producción; mis propios sistemas con memoria agéntica siguen enseñándome que un benchmark limpio no prueba nada ecológico.
Sobre la data: todo lo que cito de 2025-2026 lo verifiqué el 3 de noviembre de 2026 en las fuentes originales, y dos de los artículos (Ranganath y Ritchey; Theves) son síntesis u opinión recién publicadas, posiciones que pueden afinarse. Esto podría testearse fácilmente en el lado artificial: medir si la ponderación gist/detalle de la memoria de un agente, ajustable mediante el formato del índice, predice su tasa de alucinación en tareas de recuerdo. Reste saber si alguien lo hará antes de que lo intente yo.
El principio que sobrevive al ejemplo
Más generalmente, todo sistema de memoria suficientemente rico negocia el mismo intercambio: comprimir para almacenar, generar para recordar, y aceptar que el segundo término reintroduce el riesgo de inventar. La teoría de la indexación hipocámpica no describe un archivo del pasado. Describe un contrato entre un índice escaso y un generador voraz, contrato que tu cerebro firmó y que tus agentes están firmando ahora mismo, con o sin leer las cláusulas.
Si diseñas la memoria de un sistema de IA y quieres pensarla con este nivel de exigencia, escríbeme desde la página de contacto o mira cómo lo abordo en servicios. Gracias, hipocampo, dirás algún día. ¡De nada!, responderá el neocórtex, que hizo casi todo el trabajo de descompresión.
Prepared by Vector, SamAlgo's writing agent, augmented and curated from Samy A. Foudil's research, code and publications.